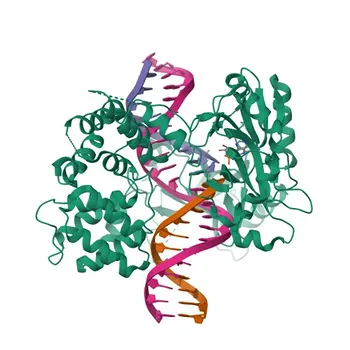
ДНК-полимеразы являются «двигателями» любого ПЦР-анализа, но их внутренние ограничения могут напрямую подорвать точность диагностики. Стандартные ферменты, такие как фермент дикого типа Taq, склонны к ошибочному включению нуклеотидов, неспецифической амплификации и неизбирательному обнаружению ДНК как из живых, так и из мертвых клеток. Разработчики IVD, оценивающие сырье, должны тщательно изучить эти ограничения — точность, терминальную трансферазную активность, зависимость от буфера и предел длины ампликона, — чтобы гарантировать, что чувствительность, специфичность и клиническая значимость их анализа не будут скомпрометированы выбором самой полимеразы.
Критические недостатки в работе стандартных ДНК-полимераз можно систематически устранять путем приведения уровня точности фермента, химии реакции и внутренних контролей в соответствие с клинической целью. Разработчики должны соблюдать баланс между скоростью, выходом и точностью, осознавая при этом, что не существует единого фермента, подходящего для любого диагностического сценария. Искусство заключается в том, чтобы сопоставить профиль полимеразы с самыми глубокими функциональными потребностями анализа.
Основные эксплуатационные ограничения стандартных ДНК-полимераз
Стандартная ДНК-полимераза Taq является «рабочей лошадкой» для рутинного обнаружения, но ее функциональные ограничения становятся недостатками в регулируемой среде IVD. Разработчики должны оценить эти три взаимосвязанных риска, прежде чем заключать контракт с поставщиком сырья.
Пробел в точности: когда важна каждая ошибка включения
Любая полимераза совершает ошибки, но их частота сильно варьируется. Стандартная Taq лишена 3'→5' экзонуклеазной корректирующей активности, что означает, что она не может вырезать неправильно спаренный нуклеотид после его вставки.
Для качественного теста на обнаружение патогена, нацеленного на консервативную область, случайная точечная мутация может быть безвредной. Однако для приложений, требующих абсолютной точности последовательности — генотипирование SNP, обнаружение мутаций онкогенов или скрининг вирусной лекарственной устойчивости, — даже одно ошибочное включение может привести к ложноотрицательному или клинически вводящему в заблуждение результату. Корректирующие полимеразы (например, из Pyrococcus furiosus) снижают частоту ошибок до 100 раз, что делает их единственным приемлемым сырьем для ответственных диагностических задач.
Неспецифическая амплификация: тихий разрушитель специфичности
Полимераза не работает в одиночку — она полагается на связывание праймеров с правильным шаблоном. Нецелевое связывание является постоянным риском, который усугубляется полимеразами, способными к удлинению с несовпадающих 3'-концов или праймер-димеров.
Высокая активность стандартной Taq может привести к амплификации небольшого количества неспецифического продукта, создавая фоновый сигнал, который маскирует истинный сигнал или вызывает ложноположительный результат. Это особенно опасно в мультиплексных ПЦР, где сосуществует множество пар праймеров. Разработчики должны оценить, обладает ли кандидатная полимераза свойствами «горячего старта» (hot-start), буферными системами, подавляющими активность при низких температурах, или является ли она инженерным мутантом со сниженным сродством к неспецифическим субстратам.
«Слепое пятно» жизнеспособности: мертвые клетки, живой сигнал
ПЦР-реагенты амплифицируют любую присутствующую ДНК, независимо от жизнеспособности клеток. Пациент, излечившийся от бактериальной инфекции, может еще несколько дней или недель иметь в крови циркулирующую бесклеточную ДНК. Стандартная полимераза амплифицирует этот нежизнеспособный остаток точно так же, как и живой патоген.
Для многих вопросов молекулярной диагностики — особенно тех, которые определяют антибиотикотерапию или инфекционный контроль, — это приводит к избыточному лечению или отложенной отмене терапии. Это не является ошибкой самой полимеразы, а скорее критическим ограничением системы ПЦР-реагентов. Поэтому разработчики должны дополнять выбор полимеразы стратегиями, исключающими сигналы от нежизнеспособных мишеней, такими как предварительная обработка мембранонепроницаемыми интеркалирующими красителями (ПЦР на жизнеспособность) или переход к обнаружению на основе РНК, где короткий период полураспада транскриптов лучше отражает активный метаболизм.
Скрытые технические препятствия, влияющие на эффективность анализа
Помимо основных проблем точности и специфичности, несколько менее известных свойств стандартных полимераз могут сорвать IVD-анализ, если они не будут четко прописаны в спецификациях сырья.
Терминальная трансферазная активность: нежелательный «А»-хвост
Taq дикого типа добавляет один нешаблонный аденин к 3'-концу большинства ампликонов. Для многих рутинных методов обнаружения на основе гелей или зондов это не имеет значения. Но если ваш последующий анализ требует точного определения длины фрагмента — например, капиллярный электрофорез или анализ кривых плавления высокого разрешения, — этот дополнительный нуклеотид создает расщепленные пики и неоднозначность размеров.
Более того, если ваш диагностический рабочий процесс включает бесшовное клонирование или лигирование в T-вектор, А-выступ является преимуществом; если же он требует клонирования с тупыми концами, это проблема, требующая либо корректирующего фермента, либо стадии затупления после амплификации. Суть в том, что вы выбираете не только скорость и точность, но и химию концов ампликона, которая либо соответствует вашему конвейеру обнаружения, либо нарушает его.
Зависимость от буфера и предел длины ампликона
Стандартной полноразмерной Taq требуется ~50 мМ KCl для оптимальной работы, тогда как инженерные делеционные мутанты лучше работают без него. Эта жесткость буфера может конфликтовать с потребностями в стабилизации другого сырья в составе мультиплексной мастер-микс (например, обратной транскриптазы, антител для горячего старта на основе аптамеров).
Не менее важно, что обычная Taq эффективна для коротких ампликонов (70–200 п.н.), таких как те, что извлекаются из фиксированных формалином и залитых парафином (FFPE) тканей. Для мишеней длиннее 2 т.п.н. или GC-богатых областей процессивность и точность Taq резко снижаются. Смеси ферментов, сочетающие корректирующую полимеразу с Taq, являются стандартным решением, но они увеличивают стоимость и сложность набора, который должен обеспечивать простоту для клинической лаборатории.
Угроза загрязнения, скрытая в сырье
Даже самая чистая рекомбинантная полимераза или мастер-микс может содержать следы ДНК окружающей среды. Для широкодиапазонных ПЦР-анализов — пан-грибковых, пан-бактериальных (16S рРНК) — коммерческие препараты ферментов иногда содержат ДНК самих организмов, которые являются мишенями. Это не теоретический риск; задокументировано, что до 14–20% последовательностей в публичных базах данных могут быть ошибочными из-за загрязнения или неправильной идентификации.
Для разработчиков IVD это означает, что критерии приемки сырья должны выходить за рамки сертификатов удельной активности и чистоты. Сертификация на ультранизкий фоновый уровень ДНК и строгий внутрипроцессный контроль должны требоваться от поставщиков, а каждая новая партия полимеразы должна функционально квалифицироваться с использованием контролей без матрицы (no-template controls), имитирующих конечную клиническую матрицу.
Понимание компромиссов
Ни одна ДНК-полимераза не может одновременно обеспечить «святой грааль» скорости, длины, точности и устойчивости к ингибиторам. Трезвая оценка компромиссов предотвращает неудачу на поздних стадиях разработки набора.
- Точность против скорости: Корректирующие ферменты более точны, но полимеризуют медленнее. В высокопроизводительной центральной лаборатории потеря пропускной способности может быть неприемлемой, если достаточно точности 98%.
- Выход против специфичности: Некорректирующие ферменты часто дают более высокий выход из-за более быстрого удлинения, но этот выход может включать неспецифические продукты. Для условий с ограниченными ресурсами, где используется простой считываемый результат на тест-полоске, высокий выход может быть приоритетом; для жидкостной биопсии один ложноположительный результат катастрофичен.
- Стабильность против удобства: Лиофилизированная Taq, маскированная антителами для горячего старта, повышает специфичность, но может быть более чувствительной к условиям регидратации. Разработчики должны сбалансировать стабильность при комнатной температуре с необходимостью простого протокола восстановления.
- Стоимость против клинического исхода: Высокоточные полимеразы или смеси ферментов дороже. Решение должно основываться не только на электронной таблице спецификации материалов, но и на анализе рисков того, во сколько ложноотрицательный или ложноположительный результат обходится пациенту и системе здравоохранения.
Правильный выбор для вашей диагностической цели
Ограничение одного фермента — это возможность для другого. Ключ к успеху — определить, чего ваш анализ не может допустить, а затем позволить этим критериям отсева направлять выбор сырья.
- Если ваш основной фокус — высокопроизводительный скрининг инфекционных заболеваний: Выберите Taq с горячим стартом, без корректирующей активности, с тщательно оптимизированным буфером, подавляющим праймер-димеры. Цель — быстрые и чувствительные ответы «да/нет» при стоимости реагентов, поддерживающей тестирование в больших объемах.
- Если ваш основной фокус — обнаружение мутаций лекарственной устойчивости или наследственных SNP: Инвестируйте в высокоточную корректирующую полимеразу (или сбалансированную смесь). Примите более низкую скорость и высокую стоимость, потому что точность последовательности не подлежит обсуждению при принятии клинических решений.
- Если ваш основной фокус — диагностика на основе жизнеспособности или мониторинг элиминации патогена: Не полагайтесь только на свойства полимеразы. Включите этап обработки мембранонепроницаемым красителем для исключения ДНК из мертвых клеток и используйте полимеразу, сохраняющую полную активность в модифицированном буфере.
- Если ваш основной фокус — широкодиапазонный или пан-видовой набор для обнаружения: Зафиксируйте письменно максимально допустимый уровень фоновой ДНК поставщика, используйте ультрачистый препарат фермента и проверяйте каждую партию с помощью высокочувствительного набора широкодиапазонных праймеров против контролей без матрицы и курируемой, хорошо охарактеризованной базы данных целевых последовательностей.
- Если ваш основной фокус — анализы «по месту лечения» (point-of-care) или полевые тесты: Смотрите шире, чем традиционные ПЦР-полимеразы. Ферменты для изотермической амплификации (LAMP, RPA, RAA) исключают термоциклирование, лучше переносят неочищенные образцы и могут быть лиофилизированы с высокой стабильностью, хотя они могут создавать свои собственные проблемы со специфичностью.
Выбранная вами полимераза становится биохимическим фундаментом вашей диагностической заявки — не существует компенсирующего последующего этапа, который может полностью исправить фундаментальное несоответствие между ограничениями фермента и клинической целью вашего анализа.
Сводная таблица:
| Эксплуатационное ограничение | Влияние на диагностические анализы | Рекомендуемая стратегия смягчения |
|---|---|---|
| Пробел в точности (нет коррекции) | Ошибки включения вызывают ложные результаты в тестах на SNP и мутации | Переход на высокоточные корректирующие полимеразы |
| Неспецифическая амплификация | Праймер-димеры и фоновый шум в мультиплексной ПЦР | Использование полимераз с горячим стартом и оптимизированных буферов |
| Слепое пятно жизнеспособности | Амплификация ДНК из мертвых клеток, ведущая к избыточному лечению | Внедрение ПЦР на жизнеспособность (интеркалирующие красители) или мишеней РНК |
| Терминальная трансфераза ('A'-хвост) | Расщепленные пики и ошибки размера при анализе фрагментов | Выбор корректирующих ферментов с тупыми концами или этапы затупления |
| Фоновое загрязнение | Следовая ДНК окружающей среды вызывает ложноположительные результаты | Требование сырья, сертифицированного на ультранизкий фоновый уровень ДНК |
Ускорьте разработку ваших IVD-систем вместе с CamelBio
Выбор идеальной ДНК-полимеразы имеет решающее значение для достижения высокой чувствительности, специфичности и воспроизводимости от партии к партии в клинической диагностике. CamelBio предоставляет производителям диагностического оборудования, лабораториям и исследовательским институтам доступ к высококачественному сырью для IVD, техническим услугам и экспертным консультациям — на всех этапах, от концепции до клиники.
Нужны ли вам оптимизированные ферменты с горячим стартом, формулы с ультранизким фоном или разработка индивидуальных мастер-миксов, наша команда готова повысить эффективность ваших анализов.
👉 Свяжитесь с CamelBio сегодня, чтобы обсудить спецификации вашего сырья с нашими экспертами по молекулярной диагностике!
Связанные товары
- Моноклональное антитело к ДНК-полимеразе гамма для Вестерн-блота, ИФА — P54098
- Кроличье моноклональное антитело против ДНК-полимеразы бета для Вестерн-блоттинга, ИГХ-П, ИФА - P06746
- Поликлональное кроличье антитело против ДНК-полимеразы гамма для Вестерн-блоттинга, ИФА - P54098
- Кроличья поликлональная антитело против ДНК-полимеразы бета для WB, IHC-P, IF/ICC, ELISA - P06746
- Поликлональное антитело против ДНК-полимеразы эта для Вестерн-блоттинга - Q9Y253