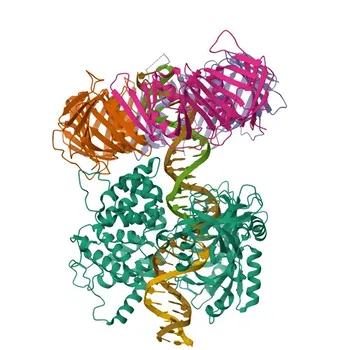
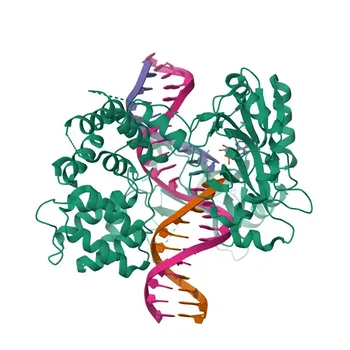
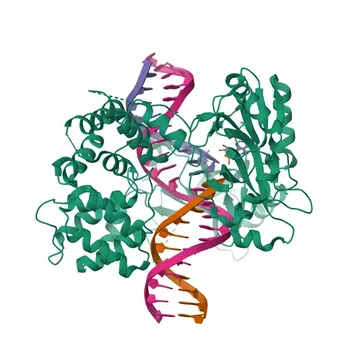
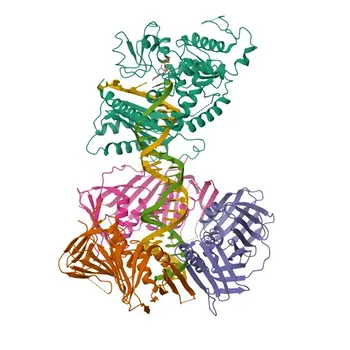
Успех практически любого современного метода детекции и секвенирования нуклеиновых кислот зависит от одной ферментативной реакции: бесшовного соединения цепей ДНК. ДНК-лигаза — это фермент, который катализирует образование фосфодиэфирной связи между соседними 3’-гидроксильными и 5’-фосфатными концами фрагментов двухцепочечной ДНК. В молекулярно-диагностических рабочих процессах — от подготовки библиотек для NGS и направленного клонирования до амплификации, опосредованной лигированием — она физически связывает последовательности адаптеров или фрагменты зондов. Чистота сырья абсолютно критична, поскольку даже следовые количества загрязняющих ферментов могут привести к деградации ценной ДНК-мишени, вызвать неспецифическое расщепление и нарушить воспроизводимость, требуемую для диагностических анализов, особенно при работе с образцами с низким содержанием материала.
ДНК-лигаза действует как молекулярный «клей», который ковалентно соединяет фрагменты ДНК, обеспечивая направленную амплификацию и детекцию. Однако присутствие нуклеаз, полимераз или других примесей в ферментном препарате может незаметно снизить специфичность и чувствительность, что делает чистоту сырья фундаментальным требованием для надежных и воспроизводимых анализов, основанных на лигировании.
Молекулярный клей: как работает ДНК-лигаза
Реакция образования фосфодиэфирной связи
ДНК-лигаза функционирует только на двухцепочечной ДНК, где 3’-гидроксильный конец находится непосредственно рядом с 5’-фосфатным концом. Фермент использует энергию для создания ковалентной фосфодиэфирной связи, «запечатывая» разрыв. Это единственное действие навсегда объединяет две молекулы ДНК в одну непрерывную цепь — шаг, который механически прост, но экспериментально незаменим.
Где лигирование применяется в вашем рабочем процессе
- Создание библиотек для NGS: Лигаза присоединяет адаптеры к фрагментированной ДНК для создания последовательностей, которые могут быть амплифицированы и прочитаны секвенатором.
- Направленное клонирование: Вставка ДНК ковалентно лигируется в линеаризованный вектор.
- Амплификация, опосредованная лигированием (включая LCR): Лигаза соединяет соседние олигонуклеотидные зонды, которые идеально гибридизировались с мишенью, обеспечивая экспоненциальную, специфичную для сигнала амплификацию.
В лигазной цепной реакции (LCR) термостабильная ДНК-полимераза и ДНК-лигаза работают вместе. Полимераза заполняет любой крошечный промежуток между двумя соседними праймерами, а лигаза «запечатывает» разрыв. Поскольку для осуществления лигирования оба праймера должны связываться с идеальной комплементарностью, система достигает необычайной специфичности — единичное несовпадение (мисматч) рядом с местом лигирования предотвращает соединение, эффективно устраняя ложноположительные сигналы.
Почему чистота сырья не подлежит обсуждению
Загрязнители, которые незаметно саботируют лигирование
Лигаза высокой чистоты гарантирует отсутствие неспецифического расщепления субстрата ДНК. К распространенным примесям относятся:
- Нуклеазы (эндо- и экзонуклеазы): Они могут деградировать ДНК-мишень в местах разрывов или на концах, что приводит к ложноотрицательным результатам или снижению чувствительности.
- Загрязняющие полимеразы: В анализах, зависимых от лигирования (например, LCR), любое присутствие полимеразы может привести к достройке праймеров с несовпадениями, снижая специфичность, полученную благодаря дизайну с двумя ферментами.
- Фосфатазы или киназы: Они изменяют необходимые терминальные фосфатные группы, напрямую блокируя реакцию лигирования.
Когда вы используете лигазное сырье, сертифицированное как свободное от этих побочных активностей, единственное, что происходит в вашей пробирке — это целевая реакция соединения.
Сохранение целостности мишеней с низким содержанием материала
Диагностические образцы — жидкостные биопсии, материалы от единичных клеток, ДНК из FFPE-блоков — часто содержат лишь пикограммы сильно фрагментированной нуклеиновой кислоты. Даже следовая активность нуклеаз в лигазном реагенте «съест» этот дефицитный материал еще до начала детекции. Чистота напрямую трансформируется в способность восстановить и прочитать каждую молекулу мишени.
Связь между чистотой и воспроизводимостью диагностики
Диагностика регуляторного уровня требует, чтобы один и тот же тест давал один и тот же ответ, запуск за запуском, партия за партией. Нечистое ферментное сырье вносит вариабельность от партии к партии в эффективность лигирования и фоновый шум. Стабильные спецификации чистоты гарантируют, что чувствительность и специфичность анализа остаются неизменными, обеспечивая надежную валидацию и получение регуляторного одобрения.
Понимание компромиссов при выборе лигазы
Чистота против стоимости в высокопроизводительных условиях
Ультрачистая лигаза, свободная от загрязнителей, часто стоит дороже. Непосредственный компромисс — это стоимость сырья на одну реакцию. Однако неудачные запуски, неоднозначные результаты и повторные тестирования, вызванные нечистыми партиями ферментов, быстро превышают любую первоначальную экономию. В диагностике с высокими ставками реальная стоимость нечистоты измеряется пропущенными диагнозами и потраченным впустую образцом.
Активность против специфичности: избегание избыточного лигирования
Даже при наличии чистой лигазы использование чрезмерного количества фермента может привести к нежелательному лигированию тупых концов — созданию химерных молекул или димеров адаптеров, которые создают фон. Чистота не заменяет тщательное титрование. Цель состоит в том, чтобы иметь достаточно лигазной активности для завершения желаемой реакции, не перегружая селективность системы.
Правильный выбор для вашего анализа
Выбор подходящего лигазного сырья зависит от конкретных требований вашего молекулярного рабочего процесса.
- Если ваш основной фокус — высокая чувствительность при работе с образцами с низким содержанием материала: Выбирайте лигазное сырье, сертифицированное как свободное от нуклеаз и демонстрирующее минимальную вариабельность от партии к партии. Это гарантирует, что каждая ценная молекула мишени будет сохранена и лигирована.
- Если ваш основной фокус — высокая специфичность при мультиплексной амплификации (например, LCR): Настаивайте на лигазе, проверенной на отсутствие загрязняющих активностей полимеразы и экзонуклеазы. Даже слабые побочные активности могут ухудшить дискриминацию одиночных несовпадений оснований, которая определяет ваш анализ.
- Если ваш основной фокус — высокопроизводительная подготовка библиотек для NGS: Балансируйте между чистотой и стоимостью, выбирая поставщика, который предоставляет подробные данные контроля качества для каждой партии. Ищите доказательства низкого образования димеров адаптеров и стабильной молярной эффективности лигирования, чтобы минимизировать влияние партий.
В конечном счете, отношение к ДНК-лигазе не просто как к реагенту, а как к краеугольному камню точности анализа превратит ваш молекулярный рабочий процесс из хрупкого в безотказный.
Сводная таблица:
| Аспект | Ключевая функция / Роль | Влияние примесей фермента |
|---|---|---|
| Молекулярный механизм | Соединяет концы 3’-OH и 5’-PO4 через фосфодиэфирные связи | Н/Д (Основная ферментативная реакция) |
| Применение в рабочем процессе | Подготовка библиотек NGS, направленное клонирование, LCR и диагностическая амплификация | Загрязнение нуклеазами/полимеразами вызывает неспецифическое расщепление или ложноположительные результаты |
| Целостность при низком содержании | Обеспечивает восстановление и детекцию нуклеиновых кислот на пикограммовом уровне | Следовая активность нуклеаз деградирует дефицитную ДНК-мишень до начала детекции |
| Диагностическая воспроизводимость | Обеспечивает стабильную эффективность соединения между партиями анализа | Примеси вызывают вариабельность между партиями и провалы регуляторной валидации |
Масштабируйте свои молекулярные анализы с помощью ферментных решений высокой чистоты
Не позволяйте следовым загрязнителям поставить под угрозу точность вашей диагностики. CamelBio предоставляет производителям диагностических систем, лабораториям и научно-исследовательским институтам доступ «в одно окно» к ультрачистому сырью для IVD, техническим услугам и консалтингу — охватывая каждый этап от концепции до клиники. Независимо от того, оптимизируете ли вы рабочие процессы NGS или разрабатываете анализы лигирования с высокой специфичностью, наша команда обеспечивает надежную консистентность от партии к партии, адаптированную к вашим потребностям.
Готовы повысить эффективность вашего анализа? Свяжитесь с CamelBio сегодня, чтобы проконсультироваться с нашими экспертами!
Связанные товары
- Моноклональное антитело к ДНК1-лигазе для Вестерн-блоттинга, ИГХ-П, ИФ/ИЦХ, ИФА - P18858
- Моноклональное антитело против ДНК-лигазы III/LIG3 для WB, IHC-P, ELISA – P49916
- Кроличье моноклональное антитело против ДНК-лигазы IV для Вестерн-блоттинга, ELISA - P49917
- Кроличья поликлональная антитело против ДНК-лигазы III/LIG3 для ВБ, ИП, ИФА — P49916
- Поликлональные антитела кролика против ДНК-лигазы IV для ВБ, ИГХ-П, ИФА - P49917