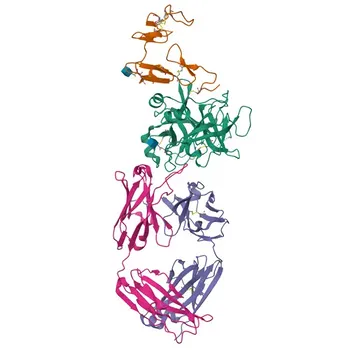
Самое важное различие заключается в наличии небелкового компонента. Простые белки состоят исключительно из аминокислот, соединенных пептидными связями, в то время как сложные белки построены на основе белкового скелета (апобелка), к которому прочно присоединена небелковая простетическая группа — например, углевод, липид или ион металла. Это структурное разделение не является чисто академическим; оно фундаментально определяет, как диагностические антитела распознают мишень, и, следовательно, направляет выбор каждого вида сырья, от калибраторов до реагентов для детекции.
Основная сложность при разработке сырья для иммуноанализа заключается в определении того, сформирован ли эпитоп, с которым должно связаться антитело, чистой аминокислотной последовательностью белка или его соединением с простетической группой. Игнорирование простетической группы может привести к тому, что высокоаффинное связывание будет невозможно, поскольку даже идеальный рекомбинантный апобелок не сможет воспроизвести трехмерные особенности, присущие нативному сложному белку.
Фундаментальное структурное разделение
Разница между простыми и сложными белками лежит на молекулярном уровне и влияет на все аспекты практического дизайна анализа.
Простые белки: чистые полипептидные цепи
Простые белки — это линейные или свернутые цепи аминокислот, не содержащие ничего другого. Такие примеры, как сывороточный альбумин или инсулин, не имеют встроенных небелковых модификаций. Вся структурная информация исходит из последовательности и ее результирующего трехмерного фолдинга. Это означает, что каждый потенциальный эпитоп кодируется непосредственно геном.
Сложные белки: белковое ядро с небелковыми партнерами
Сложные белки — это гибридные молекулы. Белковая часть (апобелок) ковалентно или прочно связана с отдельной химической единицей — простетической группой. Гликопротеины несут углеводные цепи, липопротеины включают липиды, а металлопротеины удерживают ионы металлов. Эти группы не являются просто вспомогательными элементами; они часто принудительно задают или стабилизируют специфическую конформацию, создавая совершенно новую топологию поверхности, которую невозможно предсказать с помощью простого анализа аминокислот.
Почему это различие определяет выбор сырья
Структурная реальность сложного белка вынуждает разработчиков ответить на критически важный вопрос перед закупкой любого реагента: что именно должно «видеть» антитело?
Проблема эпитопа: линейные, конформационные и группозависимые
Простой белок может генерировать линейные эпитопы (участок аминокислот) и конформационные эпитопы (трехмерные складки). В сложном белке появляется третья категория: эпитопы, созданные или замаскированные простетической группой. Углеводная ветвь на гликопротеине может быть единственной антигенной детерминантой для диагностического антитела или может экранировать пептидную последовательность, которая в противном случае была бы полностью доступна на «голом» апобелке. Если при выборе антител это не учитывается, эффективность иммуноанализа падает.
Выбор источника антигена: рекомбинантный апобелок против нативного сложного белка
Именно здесь структурное различие становится решающим фактором для выбора сырья. Если диагностические антитела нацелены на эпитоп, требующий наличия нативной простетической группы или специфической посттрансляционной модификации, чистый рекомбинантный апобелок, экспрессированный в бактериях, не подойдет. Он может иметь другую конформацию и, безусловно, будет лишен углеводного или липидного компонента. Полученный калибратор или контрольный материал будет структурно отличаться от эндогенной мишени, что приведет к неточной количественной оценке и значительному снижению аффинности связывания.
И наоборот, если критический эпитоп находится исключительно на апобелке в области, не затронутой простетической группой, хорошо охарактеризованный рекомбинантный белок может обеспечить превосходную воспроизводимость и этическую масштабируемость.
Каскадное влияние на эффективность анализа
Выбор неправильной формы белка отражается на всей системе. Калибратор на основе рекомбинантного апобелка создаст стандартную кривую, которая не отражает иммунореактивность нативного аналита, что приведет к систематической недооценке или переоценке образцов пациентов. При генерации антител иммунизация «очищенным» апобелком создает риск получения антител с высоким титром против нерелевантных линейных эпитопов, которые недоступны или отсутствуют в интактной сложной молекуле, циркулирующей в организме.
Понимание компромиссов
Игнорирование нативного состояния сложного белка часто кажется более простым путем, но последствия могут легко перевесить логистические преимущества.
Нативная сложность против рекомбинантной стабильности
Нативные очищенные белки являются «золотым стандартом» структурной аутентичности — они несут все простетические группы, гликоформы и физиологические конформации. Однако они привносят присущую им вариабельность от партии к партии и потенциальное загрязнение близкородственными молекулами. Рекомбинантные апобелки обеспечивают жесткий контроль процесса и бесконечные поставки, но они представляют собой преднамеренное упрощение, которое может стереть биологически важные эпитопы. Компромисс заключается в выборе между точностью и воспроизводимостью.
Риск перекрестной реактивности из-за общих простетических групп
Сами простетические группы могут быть источником ложноположительных результатов. Углеводный мотив, обнаруженный на одном гликопротеине, может также присутствовать на неродственных белках-носителях или других обильных сывороточных молекулах. Антитела, полученные против целой сложной молекулы, могут перекрестно реагировать с этими общими структурами, снижая специфичность. Этот риск часто заставляет разработчиков использовать дегликозилированные или делипидированные антигены при скрининге антител, намеренно нацеливаясь на белковое ядро, чтобы избежать помех, связанных с группами, но жертвуя при этом эпитопами, зависящими от этих групп.
Правильный выбор для целей вашего анализа
Ваша стратегия подбора сырья должна соответствовать тому, какую часть мишени вам действительно нужно измерить.
- Если ваша главная задача — сохранение нативной структуры для физиологической точности: используйте высокоочищенный нативный сложный белок в качестве калибратора и иммуногена. Это гарантирует наличие всех эпитопов, зависящих от простетической группы, и конформационных состояний, хотя вы должны принять неизбежную вариабельность партий.
- Если ваша главная задача — обнаружение самой специфической простетической группы: проводите скрининг антител против интактного сложного белка и тщательно проверяйте их на деконъюгированных формах, чтобы подтвердить специфическое распознавание группы. Рекомбинантный апобелок здесь будет служить отрицательным контролем, а не сырьем.
- Если ваша главная задача — нацеливание на стабильный эпитоп белкового скелета и обеспечение воспроизводимости: используйте тщательно валидированный рекомбинантный апобелок, но только после того, как на нативном аналите будет доказано, что эпитоп является линейным или конформационно интактным и полностью доступным в отсутствие простетической группы.
- Если ваша главная задача — избежание перекрестной реактивности в сложной матрице образца: рассмотрите использование деконъюгированных антигенов или рекомбинантных апобелков для генерации антител, намеренно удаляя общую группу, чтобы направить иммунный ответ на специфические белковые эпитопы, не вызывающие помех.
Структурная идентичность вашей мишени — простая или сложная — является невидимым архитектором каждого события связывания антитела. Сделать это видимым на этапе выбора сырья — вот что отличает надежный, клинически значимый анализ от сложной игры в угадайку.
Сводная таблица:
| Характеристика / Аспект | Простые белки | Сложные белки |
|---|---|---|
| Молекулярный состав | Чистые аминокислотные цепи (без небелковых групп) | Белковый скелет (апобелок) + простетическая группа (углевод, липид, ион металла) |
| Профиль эпитопов | Линейные и конформационные пептидные эпитопы | Линейные, конформационные и группозависимые/маскированные эпитопы |
| Идеальный источник антигена | Рекомбинантный апобелок (например, бактериальная экспрессия) | Нативный очищенный белок или специализированная эукариотическая экспрессия |
| Основное преимущество | Высокая воспроизводимость между партиями и масштабируемость | Сохранение физиологической структуры и аутентичной биореактивности |
| Ключевой риск разработки | Может отсутствовать важная нативная посттрансляционная модификация | Вариабельность партий и риск перекрестной реактивности из-за общих групп |
Оптимизируйте стратегию подбора сырья для иммуноанализа с CamelBio
Выбор между нативными сложными белками и рекомбинантными апобелками может как обеспечить, так и разрушить диагностическую точность вашего анализа. В CamelBio мы предоставляем производителям диагностических систем, лабораториям и исследовательским институтам доступ «в одно окно» к высококачественному сырью для IVD, техническим услугам и специализированному консалтингу, поддерживая вашу команду на каждом этапе — от первоначальной концепции до коммерческого внедрения.
Если вам нужны полностью охарактеризованные нативные антигены, индивидуальный скрининг антител или экспертная консультация по выбору эпитопов, наши технические специалисты готовы помочь.
👉 Свяжитесь с CamelBio сегодня, чтобы подобрать идеальное сырье для разработки вашего анализа.
Связанные товары
- Моноклональное антитело к протеину С для WB, IF-P, ELISA - P04070
- Моноклональное антитело против белка приона для Вестерн-блоттинга (WB) и ИФА (ELISA) - P04156
- Кроличья поликлональная антитело против прионного белка для WB, ELISA - P04156
- Поликлональные антитела к белку приона для Вестерн-блоттинга и ИФА - P04156
- Поликлональные антитела против MUSK для ВБ, ИФА — O15146