Сигнал определяется до начала ПЦР
Молекулярно-диагностический анализ может оказаться неудачным задолго до того, как на приборе для количественной ПЦР (qPCR) появится флуоресцентный сигнал.
Представьте, что низкокопийная молекула вирусной РНК попадает в реакцию обратной транскрипции. Полимераза находит свой праймер, начинает синтез кДНК и, по-видимому, выполняет именно то, что требуется для анализа.
Однако в реакции действует вторая сила: активность РНКазы H.
Эта активность может удалять матрицу РНК из вновь образованного гибрида РНК:ДНК, открывая доступ к кДНК для последующей амплификации. Она также может слишком рано разрезать матрицу, оставляя усеченную кДНК, которую не сможет восстановить ни один праймер.
В этом заключается главный парадокс диагностики на основе обратной транскрипции:
Активность РНКазы H может улучшить доступность последовательности, одновременно повреждая ту самую последовательность, которую анализ должен обнаружить.
Поэтому для производителей диагностических систем выбор заключается не просто в поиске «сильной» обратной транскриптазы. Речь идет о соответствии поведения фермента структуре, количеству и целевому назначению РНК-мишени.
Почему гибрид РНК:ДНК имеет значение
Во время синтеза первой цепи обратная транскриптаза создает цепь ДНК, комплементарную матрице РНК. Обе цепи остаются спаренными в виде гибрида РНК:ДНК.
Этот гибрид полезен во время синтеза. Он дает полимеразе стабильную матрицу для работы.
Однако после синтеза цепь РНК может стать препятствием. Вторичному праймеру или праймеру для ПЦР может потребоваться доступ к последовательности кДНК, которая все еще занята комплементарной РНК.
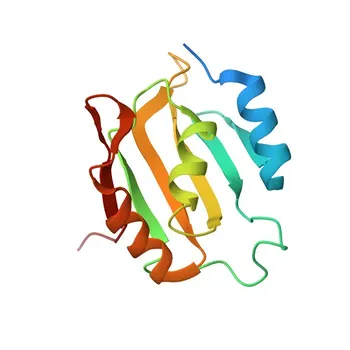
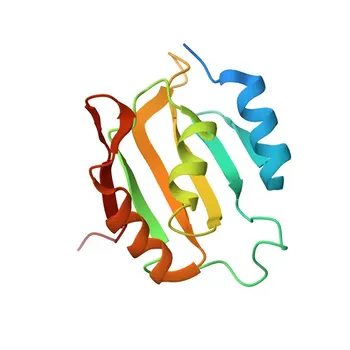
РНКаза H решает эту проблему путем селективного гидролиза цепи РНК внутри гибрида.
Результатом является более доступная матрица кДНК:
- Связывание праймеров становится менее физически ограниченным.
- Синтез второй цепи может протекать более эффективно.
- Последующая ПЦР может стать более надежной и специфичной.
- Низкокопийные мишени могут давать более сильный измеримый сигнал.
В анализах с короткими ампликонами эта функция очистки может быть крайне ценной. Но именно время определяет, принесет ли она пользу или вред.
Та же активность может разрушить длинные мишени
Высокая активность РНКазы H не всегда ждет завершения синтеза.
По мере того как обратная транскриптаза движется вдоль РНК, РНКаза H может начать деградацию матрицы рядом с растущим концом кДНК. Для короткой мишени повреждение может произойти за пределами значимой области.
Для длинной или высокоструктурированной РНК последствия иные.
Событие расщепления выше целевой области амплификации может привести к получению неполной кДНК. Если целевая последовательность находится за этой точкой, анализ не получит пригодной матрицы, даже если исходная молекула РНК присутствовала.
Это особенно важно при работе с:
- Полноразмерными или почти полноразмерными геномами вирусов
- Длинными транскриптами
- Сильно структурированной РНК
- Альтернативными формами сплайсинга
- РНК-мишенями с удаленными сайтами связывания праймеров
- Клиническими образцами с низким содержанием материала
Практический вывод неприятен, но важен:
Обратная транскриптаза может быть высокоактивной и при этом плохо подходить для конкретного анализа.
Эффективность фермента должна оцениваться с точки зрения той информации, которую анализ должен сохранить.
Три ферментативные стратегии для трех разных проблем
Разработка обратных транскриптаз в значительной степени следует одному принципу: отделить преимущества деградации РНК от ее рисков.
Обратная транскриптаза дикого типа: естественный баланс
Ферменты дикого типа, такие как нативная обратная транскриптаза M-MLV, сохраняют свою естественную активность РНКазы H.
Их главное преимущество очевидно. После синтеза кДНК матрица РНК может быть деградирована без необходимости в дополнительном ферменте или стадии реакции. Это может улучшить доступ для последующих праймеров и поддержать эффективную амплификацию коротких мишеней.
Они часто подходят для:
- Рутинной qPCR с короткими ампликонами
- Обильных РНК-мишеней
- Детекции одиночных экзонов
- Рабочих процессов, где важны простота и экономичность реакции
Их ограничения становятся более заметными при работе со сложными матрицами. Нативная активность РНКазы H может снизить эффективную процессивность, увеличить риск преждевременного расщепления и затруднить получение широкого покрытия транскрипта.
Обратная транскриптаза с дефицитом РНКазы H: защита длины матрицы
Ферменты с дефицитом РНКазы H содержат мутации, которые инактивируют домен РНКазы H при сохранении функции полимеразы.
Без активного расщепления РНКазой H во время синтеза матрица РНК остается доступной по мере того, как полимераза удлиняет кДНК. Это поддерживает получение более длинных продуктов и повышает шансы на захват информации о последовательности в структурированных или удаленных областях.
Ферменты с дефицитом РНКазы H обычно предпочтительны для:
- Длинных молекул РНК
- Структурированных вирусных геномов
- Анализа полноразмерных транскриптов
- Изучения альтернативного сплайсинга
- Низкокопийных мишеней, где важна каждая интактная молекула
Многие инженерные ферменты этой категории также эффективно работают при повышенных температурах. Более высокие температуры реакции помогают дестабилизировать вторичные структуры РНК, позволяя полимеразе проходить через области, которые в противном случае вызвали бы паузу или преждевременную терминацию.
Компромисс заключается в том, что матрица РНК может оставаться связанной с кДНК после синтеза. Поэтому дизайн праймеров и условия последующей реакции становятся более важными.
Разделенная или усиленная РНКаза H: контроль времени
Третья стратегия разделяет синтез и удаление матрицы.
Обратная транскриптаза с низкой активностью РНКазы H или ее отсутствием сначала создает максимально длинную кДНК. Затем после синтеза добавляется отдельная термостабильная РНКаза H для переваривания цепи РНК на контролируемом этапе после синтеза.
Такой дизайн меняет вопрос с «Сколько активности РНКазы H должно быть у обратной транскриптазы?» на «Когда должна проявляться активность РНКазы H?»
Такой тайминг может обеспечить полезную комбинацию:
- Синтез длинной кДНК
- Снижение преждевременного расщепления матрицы
- Целенаправленное удаление матрицы РНК
- Улучшенный доступ для последующей амплификации
- Больший контроль над количественными показателями
Дополнительный этап вносит больше соображений по разработке состава и процесса. Тем не менее, для высокоточных рабочих процессов возможность контролировать последовательность событий может быть ценнее, чем минимизация количества компонентов.
Решение — это компромисс между информацией и доступом
Разработчики анализов часто вынуждены балансировать между двумя конкурирующими потребностями.
Первая — сохранение информации: поддержание достаточной длины кДНК для включения мишени.
Вторая — доступ к матрице: удаление цепи РНК для эффективного связывания праймеров.
Эти потребности можно сравнить следующим образом:
| Стратегия фермента | Профиль РНКазы H | Основная сила | Главный фактор | Типичное применение |
|---|---|---|---|---|
| M-MLV дикого типа | Нативная или умеренная | Удаляет матрицу РНК в ходе процесса | Может преждевременно расщеплять длинные матрицы | Рутинная qPCR с короткими ампликонами |
| RT с дефицитом РНКазы H | Инактивирована | Сохраняет длинную кДНК и сложные мишени | Может потребовать планирования удаления матрицы на последующих этапах | Детекция длинной или структурированной РНК |
| Разделенная или усиленная система | Добавляется после синтеза | Разделяет полноразмерный синтез и удаление РНК | Добавляет контролируемый этап после синтеза | Абсолютная количественная оценка и высокоточная qPCR |
Универсально превосходного профиля не существует.
Фермент дикого типа может быть наиболее эффективным выбором для короткой, обильной мишени. Тот же фермент может стать неверным выбором для длинного вирусного генома.
Фермент с дефицитом РНКазы H может сохранить наиболее важную последовательность, но может потребовать более тщательного размещения праймеров и дизайна рабочего процесса.
Усиленная система может обеспечить максимальный контроль, но только если дополнительный этап валидирован как часть полного анализа.
Выбор профиля в зависимости от диагностической цели
Сама мишень должна определять процесс выбора.
Для длинной и структурированной вирусной РНК
Используйте термостабильную обратную транскриптазу с дефицитом РНКазы H.
Приоритетами являются защита матрицы, процессивность и способность проходить через вторичные структуры. Более короткая кДНК может не просто снизить производительность, она может полностью удалить диагностическую область.
Для qPCR с короткими ампликонами и высокой чувствительностью
Может быть эффективна обратная транскриптаза дикого типа со сбалансированной активностью РНКазы H.
Ее способность очищать матрицу РНК может способствовать доступности праймеров и эффективной амплификации, особенно когда мишень представлена в большом количестве или ампликон короткий.
Для абсолютной количественной оценки и широкого покрытия кДНК
Рассмотрите разделенный рабочий процесс.
Сначала сохраните длину кДНК с помощью RT с дефицитом РНКазы H или низкой активностью. Затем удалите матрицу РНК с помощью отдельно контролируемого этапа РНКазы H.
Эта архитектура может улучшить согласованность, когда количественная точность зависит от уменьшения различий в доступности матрицы.
Для любого рабочего процесса РНК-диагностики
Рассматривайте контроль нуклеаз как основное требование к дизайну.
Оптимизированная обратная транскриптаза не может компенсировать деградацию РНК, вызванную загрязнением окружающей среды. На практике одна молекула РНКазы А на рабочем столе может нанести больше вреда, чем тщательно подобранный профиль РНКазы H внутри реакции.
Неконтролируемая переменная: РНКазы окружающей среды
РНКаза H селективна. РНКазы окружающей среды часто нет.
РНКаза А и родственные загрязнения могут расщеплять одноцепочечную РНК с поразительной стабильностью. Они могут выживать при рутинном обращении, сохраняться на поверхностях и деградировать клиническую или выделенную РНК до начала обратной транскрипции.
Это создает опасную диагностическую иллюзию. Может показаться, что проблема в работе фермента, хотя реальный сбой произошел во время обработки образца или подготовки реагентов.
Поэтому надежный рабочий процесс с РНК требует контроля по всей цепочке:
- Сертифицированное сырье, свободное от нуклеаз
- Валидированные системы ингибиторов РНКаз
- Контролируемый сбор и транспортировка образцов
- Чистое разделение этапов до и после амплификации
- Соответствующие расходные материалы с низким связыванием
- Определенные условия хранения и циклы заморозки-разморозки
- Тестирование критических реагентов от партии к партии
- Мониторинг загрязнений во время производства и тестирования
Цель состоит не просто в том, чтобы добавить ингибитор РНКаз и предположить, что риск устранен. Ингибиторы имеют пределы концентрации, ограничения совместимости и собственное влияние на химию реакции.
Контроль нуклеаз должен быть валидирован как система.
Что на самом деле означает выбор сырья
Для производителя диагностических систем выбор RT — это не изолированное решение о закупке.
Фермент взаимодействует с:
- Качеством исходной РНК
- Дизайном праймеров
- Температурой реакции
- Концентрацией магния
- Солевыми условиями
- Ингибиторами, перенесенными из процесса экстракции
- Временем реакции
- Длиной ампликона
- Химией детекции
- Форматом последующей амплификации
Обратная транскриптаза, которая хорошо работает в буфере из технического паспорта, может вести себя иначе в составе готового IVD-набора.
Вот почему оценка сырья должна включать больше, чем просто заявленную активность. Полезные квалификационные вопросы включают:
| Квалификационный вопрос | Почему это важно |
|---|---|
| Сохраняет ли фермент длинную кДНК в целевых условиях реакции? | Подтверждает производительность на реальной архитектуре мишени |
| Как активность РНКазы H меняется со временем и температурой? | Выявляет риск преждевременной деградации матрицы |
| Совместим ли фермент с системой праймеров и зондов анализа? | Связывает биохимическую производительность с клиническим сигналом |
| Устойчив ли он к ингибиторам, перенесенным из экстракции? | Отражает реальные условия образцов |
| Документирована ли согласованность между партиями? | Поддерживает воспроизводимость производства |
| Сертифицировано ли сырье как свободное от нуклеаз? | Защищает целостность РНК до начала синтеза |
| Может ли поставщик обеспечить поддержку рецептуры и масштабирования? | Снижает риск разработки от концепции до производства |
Лучший поставщик — это не просто тот, кто предлагает самую высокую номинальную активность. Это тот, кто способен связать поведение фермента с полным диагностическим рабочим процессом.
От концепции до клиники
Лаборатория может позволить себе лишний раунд оптимизации. Регулируемый диагностический продукт не может полагаться на неформальные корректировки, сделанные отдельными пользователями.
Конечный набор должен вести себя предсказуемо при:
- Разных операторах
- Разных приборах
- Множестве партий реагентов
- Вариативных матрицах образцов
- Определенных периодах хранения
- Производстве в промышленных масштабах
- Условиях клинической валидации
Это требование меняет подход к оценке активности РНКазы H.
Актуальный вопрос не:
«Работает ли эта обратная транскриптаза?»
А:
«Производит ли этот профиль РНКазы H надежный, воспроизводимый клинический сигнал в целевой архитектуре анализа?»
Ответ на этот вопрос требует технических данных, знаний о рецептуре и четкого понимания того, как сырье будет производиться и использоваться.
CamelBio поддерживает производителей диагностических систем, лаборатории и научно-исследовательские институты, предоставляя доступ к сырью для IVD, техническим услугам и консалтингу на всем пути разработки от концепции до клиники. Поддержка компании помогает командам оценивать варианты обратных транскриптаз, укреплять стратегии контроля нуклеаз и приводить выбор сырья в соответствие с требованиями к характеристикам готового анализа.
Финальный принцип дизайна
Конечная чувствительность набора для РНК-диагностики определяется двумя связанными решениями.
Во-первых, обратная транскриптаза должна сохранить генетическую информацию, необходимую для анализа.
Во-вторых, рабочий процесс должен удалять или контролировать конкурирующие структуры РНК и загрязнения в нужное время.
Активность РНКазы H находится как раз между этими решениями. Слишком малая активность может ограничить доступ праймеров. Слишком большая — стереть мишень до начала амплификации.
Лучшие дизайны анализов не рассматривают РНКазу H как фиксированное свойство, которое нужно принять. Они рассматривают ее как переменную, которую нужно спроектировать, измерить и адаптировать к диагностической цели.
Для получения помощи в выборе правильного профиля фермента и свободного от нуклеаз сырья для IVD начните с Свяжитесь с нашими экспертами.
Связанные товары
- Кроличьи поликлональные антитела к RNASEH1 для WB и ELISA - O60930
- Моноклональное антитело против RNASEH1 для Вестерн-блоттинга, ELISA - O60930
- Поликлональное кроличье антитело Anti-RNASEH2C для WB и ELISA — Q8TDP1
- Анти-RNASEH2A Кроличья поликлональная антитело для Вестерн-блоттинга (WB), ИФ/ИЦХ (IF/ICC), ИФА (ELISA) - O75792
- Кроличья поликлональная антитело к RNASE2 для WB, IF-P, ИФА — P10153